
 CC-BY 4.0
1. Introduction
Avec une hausse de la température moyenne mondiale de +1,4 °C par rapport à la période préindustrielle, et une modification des régimes pluviométriques associée à une fréquence croissante des événements climatiques extrêmes (IPCC, 2022), le changement climatique remodèle profondément les écosystèmes dans tous les biomes du monde. L’Europe se réchauffe plus rapidement que la moyenne mondiale, et la France a déjà enregistré une hausse d’environ +2,1 °C par rapport aux niveaux préindustriels (Copernicus Climate Change Service, 2024), ce qui a des conséquences majeures sur les écosystèmes forestiers. Après une longue période d’expansion favorisée par l’augmentation de la surface forestière et la fertilisation des écosystèmes -du fait de la hausse des concentrations atmosphériques de CO₂, des dépôts azotés, et de l’allongement de la saison de croissance-, les forêts françaises sont désormais de plus en plus exposées aux effets néfastes du changement climatique (Ols et al., 2020). Ces impacts sont déjà observables à travers des modifications de la distribution des espèces, une baisse de la productivité et une augmentation des taux de dépérissement des arbres pour de nombreuses essences.
Les projections climatiques suggèrent une intensification de ces tendances au cours du XXIe siècle, pouvant entrainer des modifications substantielles de la distribution des espèces. Cela soulève des questions essentielles sur la capacité des peuplements à persister, et sur le choix de ceux qui seront les mieux adaptées aux conditions environnementales futures. Anticiper la composition future des forêts nécessite donc de comprendre non seulement quelle est l’exposition des espèces au changement climatique, mais aussi leur sensibilité et leur capacité d’adaptation. Cela nécessite également d’identifier les espèces capables de persister ou de remplacer celles existantes dans des conditions climatiques nouvelles. Cette évaluation constitue une étape essentielle pour orienter les stratégies de gestion forestière et de conservation. Cet article vise à synthétiser les connaissances actuelles sur les conséquences du changement climatique dans les forêts françaises, dans le but de pouvoir identifier les espèces d’arbres susceptibles de contribuer à la composition des forêts de demain.
2. Hétérogénéité régionale des changements de température et de précipitations en France
Sur l’ensemble du territoire français, des modifications significatives des températures et des précipitations ont déjà été observées, avec des contrastes marqués selon les régions, les périodes et les saisons. L’année 2018 marque le début d’une séquence d’années particulièrement chaudes et sèches, dont l’intensité varie selon les régions (Schuldt et al., 2020). Les évolutions les plus marquées entre les périodes 1961–1990 et 2018–2024 concernent la période estivale, avec des hausses de température supérieures à 2,5 °C sur une grande partie de l’est de la France et dépassant localement 3 °C, comme l’illustre la Figure 1. Les précipitations estivales ont, quant à elles, augmenté le long de la façade occidentale du pays, tandis qu’elles ont diminué dans les régions orientales et méridionales, à l’exception de la Corse, avec une forte hétérogénéité locale. La combinaison de ces évolutions de température et de précipitations se traduit par des variations contrastées de la disponibilité en eau pour la végétation, selon les régions et les périodes de l’année. Deux régions apparaissent particulièrement exposées à ces évolutions récentes : le nord-est de la France et la région méditerranéenne. À l’inverse, la Bretagne, le sud-ouest et la Corse semblent avoir connu des évolutions climatiques moins marquées.
3. Les espèces d’arbres modifient leur aire de répartition en réponse au changement climatique
La distribution des espèces d’arbres dépend fortement des conditions climatiques. Les conditions de température et de disponibilité en eau déterminent en partie les limites climatiques dans lesquelles les espèces peuvent s’établir et persister au sein de leur niche écologique (Hutchinson, 1957). Face aux changements en cours, les espèces peuvent déplacer leur aire de répartition, disparaître localement ou s’adapter. Au cours de l’histoire climatique, les fluctuations environnementales ont régulièrement entraîné des modifications des aires de répartition des espèces, accompagnées de déplacements et de contractions de leurs distributions. Ces dynamiques se sont généralement produites sur de longues échelles de temps, les aires de répartition progressant ou se contractant au gré des cycles glaciaires et interglaciaires (Benito-Garzon et al., 2014). Par exemple, les espèces de Quercus à feuilles caduques, qui constituent aujourd’hui l’un des genres forestiers les plus importants d’Europe, étaient pratiquement absentes de la France à la fin de la dernière glaciation avant d’étendre considérablement leur aire de répartition au cours de l’Holocène (Birks and Tinner, 2016). En revanche, le rythme actuel du changement climatique est exceptionnellement rapide au regard de ces fluctuations historiques, ce qui soulève la question de la capacité des espèces à faire face à des changements environnementaux rapides ou à déplacer leur aire de répartition suffisamment rapidement pour suivre les conditions climatiques qui leur sont favorables (Loarie et al., 2009).
En l’absence d’adaptation, le changement climatique peut entraîner un déplacement des conditions climatiques favorables aux espèces le long des gradients de latitude et d’altitude, avec une possibilité de colonisation de zones périphériques plus froides, tandis que la régénération peut diminuer et la mortalité augmenter aux limites chaudes, notamment méridionales, des aires de répartition actuelles (Lenoir and Svenning, 2015). Les modèles de distribution des espèces (Species Distribution Models, SDM) sont couramment utilisés pour estimer les zones susceptibles de présenter des conditions climatiques favorables aux espèces dans le futur (Franklin, 2010; Guisan and Zimmermann, 2000). Sur le territoire français, ces modèles prévoient des changements substantiels des zones climatiquement favorables aux espèces d’ici la fin du XXIe siècle, avec des contractions pour certaines espèces tempérées et montagnardes et des expansions pour plusieurs espèces méditerranéennes (Hanewinkel et al., 2013; Mauri et al., 2022), comme l’illustre la Figure 2. Ces modèles fournissent des informations précieuses sur les évolutions potentielles des conditions climatiques favorables aux espèces, mais reposent généralement sur l’hypothèse d’une relation d’équilibre entre leur distribution et le climat et prennent imparfaitement en compte les processus démographiques, les contraintes de dispersion, les interactions biotiques et les capacités d’adaptation. Ils peuvent ainsi surestimer l’ampleur et la vitesse des déplacements futurs des aires de répartition (Buisson et al., 2010) et fournissent principalement des perspectives sur les distributions potentielles à long terme plutôt que sur la dynamique réelle des populations à court terme.
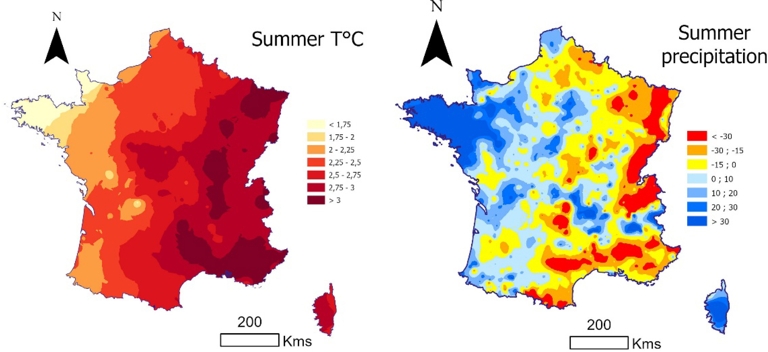
Évolution des températures (à gauche, °C) et des précipitations (à droite, mm) estivales entre les périodes 1961–1990 et 2018–2024.
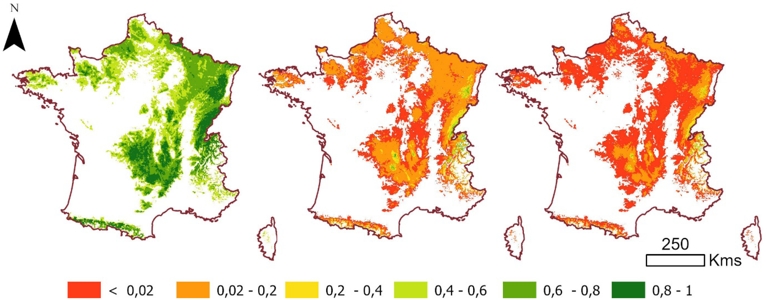
Exemple de l’évolution prévue des zones favorables aux peuplements de Fagus sylvatica (probabilités de présence), entre les périodes 1961–1990 (à gauche) et 2071–2100 selon les scénarios SSP3-7.0 (au centre) et SSP5-8.5 (à droite). Les « Shared Socioeconomic Pathways » (SSP) sont des scénarios standardisés décrivant différentes trajectoires de développement sociétal. Les projections pour la période 2071–2100 correspondent à la moyenne de trois modèles de circulation générale (MCG) : MRI-ESM2-0, IPSL-CM6A-LR et GFDL-ESM4.
De nombreuses études indiquent que les aires de répartition des espèces d’arbres réagissent déjà au réchauffement climatique (Rigling et al., 2013). Des comparaisons entre la distribution des arbres juvéniles et celle des arbres matures montrent, dans certaines régions, un déplacement vers des conditions plus fraîches aux limites des aires de répartition (Monleon and Lintz, 2015). Certaines espèces, comme Fagus sylvatica, présentent ainsi des changements de distribution le long des gradients climatiques cohérents avec le réchauffement observé au cours des dernières décennies (Klopcic et al., 2022). Ces déplacements sont particulièrement marqués dans les régions montagneuses (Crimmins et al., 2011), woù les espèces peuvent plus facilement suivre le déplacement des conditions climatiques favorables vers des altitudes plus élevées que vers des latitudes plus élevées. Par exemple, Lenoir, Gegout et al., (2008) ont estimé une progression vers les hautes altitudes d’environ 29 m par décennie depuis le début du XXe siècle pour les espèces d’arbres présentes en France. Bertrand et al. (2011) ont en revanche observé des changements moins marqués dans les zones de plaine, où le déplacement des aires de répartition nécessite une dispersion sur de plus longues distances pour permettre aux espèces de suivre l’évolution des conditions climatiques favorables.
4. Évolutions des processus démographiques des arbres induites par le climat
De nombreuses observations de terrain montrent que les changements climatiques affectent déjà les processus démographiques des arbres (McDowell et al., 2020). La productivité forestière constitue un indicateur de la vitalité des peuplements, y compris en l’absence de signes visibles de dépérissement. Des études récentes ont mis en évidence une diminution généralisée de la productivité dans de vastes secteurs des forêts françaises, cette diminution étant plus précoce et plus marquée dans les régions méditerranéennes que dans les zones tempérées (Hertzog et al., 2025). Dans le nord de la France, le déclin de la productivité est plus récent et a été précédé d’une période de croissance accélérée, favorisée par la fertilisation liée aux dépôts azotés et à l’augmentation des concentrations atmosphériques de CO₂, ainsi que par l’allongement de la saison de croissance. Le changement climatique affecte également la régénération naturelle, la chaleur et la sécheresse pouvant limiter la survie et l’établissement des semis (Bolte, Mansourian, et al., 2023; Kremer et al., 2025). Dans les régions méditerranéennes et semi-arides, ces effets sont particulièrement prononcés et peuvent compromettre la persistance de certains peuplements soumis à des stress climatiques répétés (Enríquez-de-Salamanca, 2022).
Parallèlement, une augmentation marquée du dépérissement forestier est observée, notamment dans une bande s’étendant du Centre-Ouest au nord-est de la France (Figure 3). Selon les estimations de l’Inventaire forestier national (IGN, 2024), près de 4 % des forêts métropolitaines sont actuellement touchées par des dépérissements, la superficie concernée ayant plus que doublé entre 2017 et 2022. Ces tendances concordent avec les observations réalisées à l’échelle européenne, qui mettent en évidence une diminution de la vitalité des arbres et une augmentation de la défoliation. Ces dernières années, environ un tiers des arbres présentait ainsi une défoliation modérée à sévère (Hammond et al., 2022; Michel and Seidling, 2018).
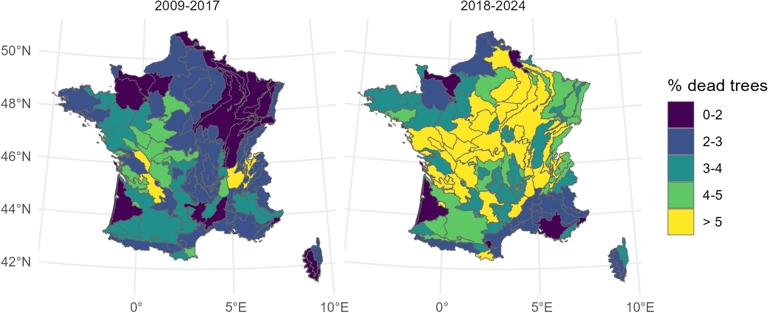
Comparaison des taux de mortalité des arbres selon les régions écologiques (SER, IGN) pour les principales essences forestières en France au cours des périodes 2009–2017 et 2018–2024 (n = 1 321 769 arbres). Les parcelles touchées par l'exploitation forestière, le vent ou les incendies ont été exclues (source : inventaire forestier, IGN). L'année 2018 a été choisie car elle marque le début d'une série d'années plus chaudes et sèches que les précédentes.
De plus en plus de données indiquent que la mortalité des arbres ne se limite pas aux marges chaudes des aires de répartition des espèces, mais touche également des populations situées au cœur de leurs niches écologiques (Bose et al., 2024; Cavin and Jump, 2017). Ainsi, des taux de mortalité élevés sont observés dans le nord-est de la France, dans des régions historiquement caractérisées par un climat tempéré et une disponibilité en eau relativement élevée, mais récemment soumises à des stress climatiques répétés (Figure 1). Ces schémas de mortalité pourraient en partie refléter un phénomène de « dépassement structurel », selon lequel la biomasse forestière développée dans des conditions climatiques historiquement favorables excède le niveau que les conditions environnementales actuelles permettent de maintenir durablement (Jump et al., 2017; Y. X. Zhang et al., 2024). À l’inverse, le dépérissement apparaît plus limité dans les régions historiquement caractérisées par des conditions chaudes et sèches, ce qui pourrait témoigner, au moins en partie, d’une acclimatation ou d’une adaptation des peuplements à ces contraintes (Isaac-Renton et al., 2018).
Ces dynamiques sont également influencées par les caractéristiques des peuplements, telles que l’âge, la composition en espèces, la densité et la complexité structurelle, qui constituent des déterminants importants de la dynamique forestière (Manion, 1981; Taccoen, Piedallu, Seynave, et al., 2019), Elles sont en outre modulées par l’augmentation de la fréquence et de l’intensité des perturbations biotiques, dont les effets peuvent être exacerbés par le changement climatique (Marini et al., 2017). L’interaction entre ces différents facteurs complique l’identification de la contribution propre du changement climatique à la vulnérabilité des espèces. Les baisses de productivité et l’augmentation des dépérissements ont néanmoins des conséquences écologiques importantes. Elles ont notamment contribué à une réduction marquée du puits de carbone des forêts françaises depuis le début du XXIe siècle (Ciais et al., 2026; CITEPA, 2023).
5. La compréhension de la capacité d’adaptation des arbres est un facteur clé
*La distribution spatiale du dépérissement forestier pourrait en partie s’expliquer par des différences de capacité d’adaptation entre les espèces. Les populations originaires de régions historiquement plus chaudes ou plus sèches pourraient notamment être moins vulnérables aux stress climatiques que celles provenant de régions où ces contraintes sont historiquement moins marquées (Depardieu et al., 2020). La capacité d’adaptation désigne l’aptitude des espèces et des populations à faire face à des conditions environnementales changeantes et à maintenir leur survie et leur fonctionnement dans ces nouvelles conditions. Elle peut reposer à la fois sur la plasticité phénotypique et sur des mécanismes évolutifs liés notamment à la diversité génétique et au flux génétique entre les populations (Lindner et al., 2010; Valladares et al., 2014). La plasticité phénotypique permet aux arbres de modifier certains de leurs traits morphologiques, physiologiques et phénologiques en réponse aux variations des conditions environnementales. Ces ajustements peuvent notamment concerner les caractéristiques foliaires, la conductance stomatique, l’efficacité d’utilisation de l’eau ou encore la date du débourrement (Aubin et al., 2016; Nicotra et al., 2010). La plasticité peut également se traduire par des modifications de la profondeur d’enracinement ou de l’allocation de la biomasse, susceptibles d’améliorer l’accès à l’eau du sol et ainsi de limiter les effets de la sécheresse (Schenk and Jackson, 2002).
La diversité génétique peut favoriser la capacité d’adaptation des populations face aux changements environnementaux, tandis que le flux génétique entre les populations permet l’échange de variants génétiques susceptibles de contribuer aux réponses adaptatives locales (Royer-Tardif et al., 2021). Cependant, la longue durée de vie des arbres peut limiter la vitesse de l’adaptation évolutive, augmentant ainsi le risque de maladaptation face à des conditions climatiques qui évoluent rapidement (del Castillo et al., 2022). Les premiers stades de développement, notamment les semis, peuvent présenter une forte plasticité et sont soumis à des pressions de sélection importantes, susceptibles de favoriser la sélection d’individus ou de génotypes présentant des traits mieux adaptés aux nouvelles conditions climatiques (Vitasse et al., 2013). La grande variabilité des traits adaptatifs entre les espèces et les populations complique toutefois l’évaluation et la comparaison de leurs capacités d’adaptation. Une incertitude importante subsiste ainsi quant à la capacité des arbres à répondre à des changements climatiques rapides (Royer-Tardif et al., 2021). Bien que la sélection naturelle puisse favoriser les individus dont les traits sont les mieux adaptés aux conditions environnementales, la capacité d’adaptation des populations d’arbres demeure difficile à quantifier, notamment en raison de la complexité des interactions entre plasticité phénotypique, diversité génétique et environnement (Garzon et al., 2019).
6. Les essences méditerranéennes semblent moins affectées par le changement climatique
Dans ce contexte de transformation des forêts, certaines espèces pourraient voir leur population décliner, tandis que d’autres pourraient bénéficier des nouvelles conditions environnementales (Morin et al., 2008). La comparaison des variations de productivité et des taux de mortalité entre les espèces permet de mettre en évidence des réponses contrastées aux évolutions environnementales récentes. Selon l’IGN (IGN, 2023), les pertes de productivité les plus marquées sur la période 2006–2020 ont été observées chez Picea abies, Pseudotsuga menziesii et Fagus sylvatica, en particulier dans le nord-est de la France (IGN, 2024). Des baisses plus modérées ont été signalées pour les espèces du genre Quercus, légèrement plus marquées pour Quercus robur que pour Quercus petraea. En revanche, les pins méditerranéens — notamment Pinus pinaster et Pinus halepensis — ont maintenu une productivité relativement stable, voire en hausse, au cours de la même période (IGN, 2023).
Des tendances globales similaires se dégagent pour un certain nombre d’essences lorsque l’on examine les taux de mortalité entre 2009 et 2024, avec une mortalité plus élevée observée pour Picea abies et des taux plus faibles pour les espèces méditerranéennes, comme Pinus pinaster et Pinus halepensis (Figure 4). Cependant, des divergences notables entre les variations de productivité et les taux de mortalité apparaissent également pour certaines espèces. Par exemple, Pseudotsuga menziesii, dont les pertes de productivité indiquées sont substantielles (ibid.), ne semble pas avoir connu d’augmentation de sa mortalité ces dernières années (Figure 4). De même, Fagus sylvatica présente des taux de mortalité modérés au cours de la période 2018–2024, malgré une baisse de sa productivité estimée par l’IGN. À l’inverse, Pinus sylvestris, dont la productivité semble rester relativement stable, présente des taux de mortalité élevés et en augmentation au cours de la période étudiée. Dans l’ensemble, les niveaux de dépérissement les plus importants semblent concerner des espèces soumises à de fortes pressions biotiques, telles que Castanea sativa, affectée par le chancre du châtaignier et la maladie de l’encre, Fraxinus excelsior, touchée par le dépérissement du frêne associé à Chalara fraxinea, et Picea abies, fortement affecté par les infestations de scolytes (Trugman et al., 2021).
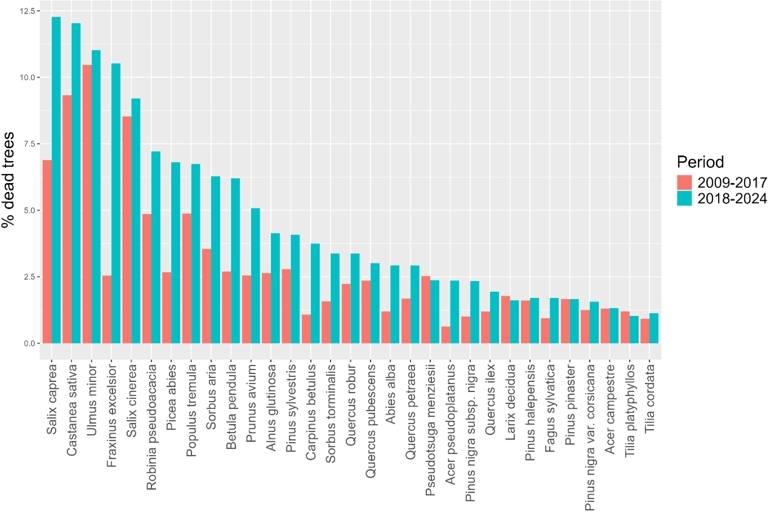
Comparaison des taux de mortalité des 31 principales essences forestières en France entre 2009–2017 et 2018–2024 (n = 1 321 769 arbres). Les parcelles touchées par l'exploitation forestière, le vent ou les incendies ont été exclues (source : inventaire forestier national, données IGN).
Ces données doivent cependant être interprétées avec prudence, car elles sont influencées par les caractéristiques des peuplements et des conditions écologiques locales, ainsi que les différences d’ampleur des changements climatiques et d’intensité des épidémies. Les divergences entre les réponses en matière de croissance et de mortalité soulignent en outre que les facteurs favorisant la croissance des arbres peuvent différer de ceux qui accroissent leur risque de mortalité (Das et al., 2016). Néanmoins, les gradients observés corroborent l’hypothèse d’un déplacement des conditions climatiques favorables aux espèces vers des altitudes ou des latitudes plus élevées, les taxons originaires d’environnements frais et humides semblant être davantage désavantagés que les espèces thermophiles (Taccoen, Piedallu, Seynave, et al., 2022).
Cette comparaison met également en évidence une moindre sensibilité apparente des essences méditerranéennes, en particulier des pins méditerranéens, au réchauffement à la limite nord de leur aire de répartition, malgré l’augmentation importante des températures observée dans le sud de la France (Figure 1). Toutefois, cette moindre sensibilité apparente pourrait être remise en question à l’avenir par la progression d’agents pathogènes émergents, tels que le nématode du pin, dont les effets peuvent être amplifiés par des conditions climatiques plus chaudes (Karmezi et al., 2022).
7. Un cadre multiapproche pour anticiper les conséquences du changement climatique sur les forêts
Les changements déjà observés dans la répartition des espèces d’arbres et dans les processus démographiques devraient se poursuivre, voire s’intensifier, à mesure que le réchauffement climatique progresse. Dans ce contexte, il est essentiel d’identifier les compositions forestières les mieux adaptées aux conditions climatiques futures (Keenan, 2012). Un large éventail d’outils permet aujourd’hui d’aider à anticiper les conséquences du changement climatique sur les forêts (Orazio et al., 2017). Compte tenu de la complexité des systèmes forestiers et des nombreuses incertitudes, il apparait pertinent de combiner plusieurs sources d’information et des approches méthodologiques complémentaires. Nous proposons ainsi un cadre en cinq étapes intégrant les données climatiques, les caractéristiques environnementales locales, les sensibilités propres aux espèces et différents outils d’aide à la décision, afin de contribuer à évaluer la vulnérabilité des forêts dans un but de gestion adaptative des forêts, à différentes échelles spatiales, de la région naturelle à la parcelle.
Étape 1 : Caractérisation des changements climatiques locaux passés et futurs.
L’évaluation de la vulnérabilité des forêts doit commencer par la caractérisation des changements climatiques déjà observés à l’échelle locale, complétée par des projections futures selon différents scénarios climatiques. L’exposition climatique doit prendre en compte les évolutions de la température, de la disponibilité en eau ainsi que la fréquence et l’intensité des événements climatiques extrêmes. L’ampleur et la vitesse des changements climatiques constituent des facteurs déterminants de l’exposition des espèces et peuvent conditionner leur capacité à s’adapter aux nouvelles conditions environnementales.
Étape 2 : Évaluation des conditions environnementales locales.
Une caractérisation locale des conditions stationnelles est nécessaire pour prendre en compte les contraintes écologiques susceptibles de moduler les effets du climat. Les informations pertinentes comprennent notamment la capacité de rétention d’eau du sol, étroitement liée à sa profondeur et à ses propriétés physiques, sa fertilité et la présence éventuelle d’engorgements. Certaines caractéristiques topographiques peuvent également être intégrées, notamment en raison de leur influence sur les flux d’eau et la redistribution de l’humidité du sol. Ces informations complètent les données climatiques et peuvent être combinées à celles-ci, afin d’estimer plus finement la disponibilité en eau pour la végétation. Ces conditions stationnelles peuvent être caractérisées à partir de relevés de terrain ou de cartes dérivées existantes et, lorsque les données disponibles sont insuffisantes, complétées par des modèles spatialisés disponibles sous Systèmes d’Informations Géographiques (SIG). L’ensemble de ces variables permet ainsi d’affiner l’évaluation des contraintes auxquelles les espèces seront soumises.
Étape 3 : Evaluation de sensibilité des espèces.
La sensibilité des espèces peut être évaluée à partir des connaissances disponibles sur leurs caractéristiques fonctionnelles, leurs exigences écologiques, et leur tolérance aux différentes contraintes climatiques, ainsi que sur leurs réponses à des événements climatiques passés. Plusieurs bases de données synthétisent les caractéristiques écologiques et les préférences climatiques des espèces (Choat et al., 2012; Ellenberg et al., 1992; Kattge et al., 2020). Des indicateurs tels que le succès de régénération, la croissance des arbres et les taux de mortalité peuvent également être mesurés sur le terrain et comparés selon les niveaux d’exposition climatique. Ces évaluations peuvent s’appuyer sur des protocoles standardisés de suivi du dépérissement, sur des analyses dendrochronologiques, sur des données d’inventaire forestier, sur des réseaux de surveillance de la santé des peuplements ou encore des enquêtes de terrain ciblées. La combinaison de ces informations permet de mieux caractériser localement la sensibilité propre à chaque espèce et, lorsque les données le permettent, les différences entre populations.
Étape 4 : Comparaison des outils d’aide à la décision intégrant le climat.
De nombreux outils d’aide à la décision sont actuellement développés principalement sous forme de modèles, pour aider à orienter le choix des espèces et des pratiques sylvicoles favorisant l’adaptation des forêts aux conditions climatiques futures (Cochard et al., 2021; Piedallu et al., 2023; Timberlake and Schultz, 2019). Ces outils couvrent un continuum allant des modèles empiriques, principalement fondés sur les relations observées entre les espèces et leur environnement, aux modèles basés sur les processus, qui représentent explicitement certains mécanismes écologiques. Les modèles de distribution des espèces constituent l’une des principales approches empiriques. Ils permettent de caractériser les relations entre la distribution des espèces et les conditions environnementales, puis de projeter les zones potentiellement favorables dans le cadre de scénarios climatiques futurs. Lorsque les données utilisées pour leur calibration représentent suffisamment bien les facteurs déterminant la distribution des espèces, ces modèles peuvent contribuer à identifier les zones susceptibles de rester favorables à long terme (Thuiller et al., 2005). D’autres approches empiriques permettent de modéliser et de cartographier la croissance, le dépérissement ou la mortalité des arbres à partir de variables relatives au peuplement, au sol et au climat. Elles peuvent fournir une représentation plus fine des tendances récentes de vulnérabilité, mais leur extrapolation à long terme reste plus incertaine (Piedallu et al., 2023). Les modèles basés sur les processus représentent quant à eux explicitement certains mécanismes écologiques et permettent d’explorer les réponses des écosystèmes à l’évolution des conditions environnementales. Certains peuvent simuler la dynamique forestière sur plusieurs décennies et évaluer les effets potentiels du changement climatique sur la régénération, la croissance et la mortalité (Chuine and Beaubien, 2001; Cochard et al., 2021; Ogee et al., 2003). Leur calibration et leur paramétrisation à différentes échelles spatiales peuvent toutefois être difficiles, notamment en raison de la disponibilité limitée de données et de la complexité des interactions entre les processus écologiques. Chaque approche présente ainsi des limites et des sources d’incertitude propres, qui doivent être évaluées en fonction des objectifs de l’analyse, de la qualité des données disponibles et de l’échelle spatiale et temporelle considérée. La comparaison de plusieurs modèles et la confrontation de leurs résultats constituent donc une étape essentielle pour identifier les tendances robustes et distinguer celles qui restent fortement incertaines.
Étape 5 : Synthèse des informations et recommandations pour déterminer les espèces.
L’évaluation des réponses des forêts au changement climatique nécessite enfin de synthétiser les informations issues des différentes approches. Cette synthèse pourrait s’appuyer sur un nouveau type de référentiel inspiré des catalogues et guides traditionnels des types de stations forestières (Gaudin, 2008). Un tel référentiel permettrait d’évaluer l’aptitude des différentes espèces à partir de critères complémentaires intégrant à la fois les conditions climatiques, les caractéristiques stationnelles, la sensibilité des espèces et les résultats des modèles. Une telle démarche nécessite toutefois une expertise importante, en raison de la diversité des contextes locaux et des divergences potentielles entre les différentes sources d’information. La pertinence et la fiabilité de chaque indicateur doivent donc être évaluées de manière critique, et les résultats présentant des incohérences doivent être identifiés. Le choix d’une composition forestière adaptée aux conditions futures doit également intégrer plusieurs catégories de risques, notamment ceux directement liés au réchauffement et à l’assèchement du climat, mais aussi les incendies, les tempêtes, les risques d’érosion, et l’émergence ou l’extension de nouveaux agents pathogènes. Malgré les incertitudes qui subsistent, cette approche intégrée permettrait de croiser différentes sources d’information et de mieux caractériser les trajectoires possibles des forêts. Elle pourrait ainsi contribuer à identifier les espèces et les populations les plus susceptibles de persister dans les conditions futures et à concevoir des stratégies de gestion adaptative mieux adaptées aux spécificités locales.
8. Divers scénarios concernant la composition future des forêts face au changement climatique
La composition des forêts pourrait suivre différentes trajectoires selon la combinaison entre l’exposition des espèces et des peuplements aux facteurs de stress, leur sensibilité intrinsèque et leur capacité d’adaptation (Keenan, 2015) (Figure 5). Lorsque la vulnérabilité reste faible, les peuplements pourraient se maintenir dans une composition relativement proche de leur état actuel. À mesure que la vulnérabilité augmente, cependant, la mortalité différentielle des individus ou des espèces peut progressivement modifier la composition des peuplements. La disparition de certains individus peut dans un premier temps réduire la compétition pour la lumière et l’eau et favoriser la croissance et la régénération des arbres restants. Par exemple, les semis établis dans des conditions plus stressantes peuvent développer des caractéristiques qui améliorent leur adaptation aux conditions climatiques futures (X. X. Zhang et al., 2025). À l’inverse, lorsque le dépérissement devient important, la disparition du couvert forestier peut entraîner une modification du microclimat, notamment une augmentation de la température et du déficit hydrique, susceptible de compromettre la régénération naturelle et la reconstitution du couvert forestier (Thom et al., 2023).
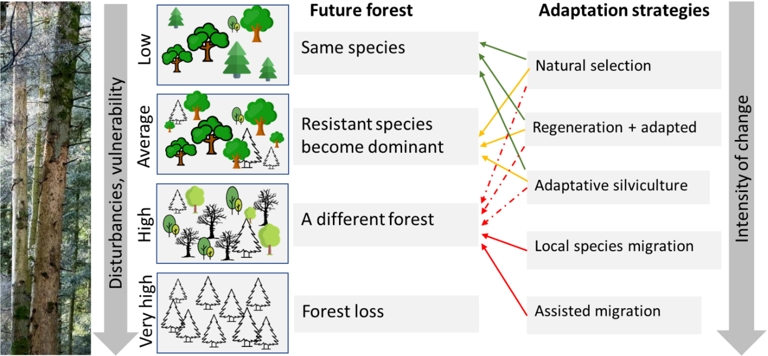
Différentes voies d'adaptation possibles en réponse à l'intensification des perturbations.
La sylviculture adaptative vise à anticiper ces trajectoires et à intervenir avant que les changements ne compromettent durablement la pérennité des peuplements (Bolte, Ammer, et al., 2010). Plusieurs leviers peuvent être mobilisés, notamment la modification de la structure et de la densité des peuplements, la diversification de leur composition en espèces et la préservation des ressources en eau. Ces facteurs influencent différents processus démographiques et peuvent contribuer à réduire la sensibilité des peuplements aux épisodes de sécheresse (Taccoen, Piedallu, Seynave, et al., 2021). La réduction de la surface terrière peut notamment diminuer la compétition entre les arbres et améliorer la disponibilité en eau en limitant l’interception des précipitations et l’évapotranspiration (Sohn et al., 2016). La diversification des espèces peut également répartir les risques et limiter la sensibilité du peuplement à certains agents pathogènes, tout en modifiant les interactions entre les arbres, notamment la compétition, la complémentarité et la facilitation (Jactel et al., 2021; Pretzsch et al., 2015). Ces effets restent toutefois fortement dépendants des espèces considérées et des conditions locales (Bose et al., 2024). La structure des peuplements, notamment la coexistence de classes d’âge différentes, peut également jouer un rôle important dans leur réponse aux changements environnementaux (Searle et al., 2022). Enfin, la préservation de la ressource en eau constitue un levier essentiel, notamment à travers des pratiques limitant le compactage des sols et favorisant l’infiltration.
Lorsque la vulnérabilité d’une espèce devient suffisamment importante pour compromettre le renouvellement du peuplement, une évolution de sa composition peut devenir nécessaire. Plusieurs options peuvent alors être envisagées, en privilégiant autant que possible les processus naturels. Des espèces secondaires déjà présentes peuvent être favorisées en encourageant leur régénération naturelle ou leur expansion depuis les peuplements voisins. Lorsque cette régénération est insuffisante, des plantations d’enrichissement peuvent permettre d’introduire progressivement des espèces ou des provenances mieux adaptées aux conditions climatiques futures. L’objectif est alors de diversifier la composition des peuplements et de favoriser des espèces présentant une meilleure tolérance aux températures élevées et à la sécheresse, tout en limitant autant que possible le recours à la régénération artificielle.
Le choix des espèces introduites doit toutefois tenir compte des conditions stationnelles et de leurs exigences écologiques, notamment en matière de disponibilité en lumière. Dans le nord-est de la France, par exemple, le CNPF recommande différentes espèces selon les conditions de luminosité, parmi lesquelles Tilia spp., Acer spp. et Carpinus betulus dans les situations de faible luminosité, tandis que Quercus robur, Pinus sylvestris et Larix decidua peuvent être privilégiés dans les zones plus lumineuses (CNPF, 2024). ILorsque des peuplements monospécifiques subissent une mortalité importante et que la régénération naturelle ne permet pas de reconstituer rapidement un couvert forestier, un reboisement complet peut devenir nécessaire (Fady et al., 2021). Cette situation est notamment observée dans certains peuplements d’épicéa commun de plaine fortement dépérissants. La perte du couvert peut alors accentuer localement les températures et le déficit hydrique et rendre plus difficile l’installation de la régénération.
Lorsque les espèces ou provenances susceptibles d’être mieux adaptées ne sont pas naturellement présentes à proximité, le recours à la migration assistée peut être envisagé. Celle-ci peut consister à introduire des provenances méridionales d’espèces indigènes ou, dans certaines situations, des espèces non indigènes présentant des caractéristiques écologiques jugées compatibles avec les conditions futures (Aitken, Yeaman, et al., 2008; Pedlar et al., 2012). Les essais de provenance et les méta-analyses ont montré une variation intraspécifique importante des caractères fonctionnels des arbres, notamment de leurs réponses à la sécheresse et aux autres stress climatiques (Alberto et al., 2013; Copie et al., 2025). Les populations originaires de régions historiquement plus chaudes ou plus sèches peuvent notamment présenter une meilleure tolérance à la sécheresse et une survie accrue dans des conditions de déficit hydrique, en lien avec des différences de fonctionnement hydraulique, de phénologie et d’utilisation de l’eau (Isaac-Renton et al., 2018). Ces résultats fournissent une base scientifique pour la sélection de provenances adaptées aux conditions climatiques futures.
En France, ces approches sont actuellement évaluées dans le cadre de plusieurs programmes expérimentaux et opérationnels, notamment Giono, ClimEssences et RENEssence (Musch et al., 2022; ONF, 2022). Ces initiatives visent à évaluer les performances de différentes espèces et provenances dans des conditions climatiques actuelles et futures. La plateforme ClimEssences1 (CNPF/ONF) fournit notamment des informations sur les caractéristiques écologiques des espèces et des provenances afin d’orienter leur choix dans différents contextes climatiques. Les programmes expérimentaux portent notamment sur des provenances méridionales ou tolérantes à la sécheresse d’espèces indigènes telles que Quercus robur, Q. petraea, Q. pubescens, Fagus sylvatica, Abies alba et Pinus sylvestris, ainsi que sur certaines espèces non indigènes considérées comme potentiellement adaptées aux conditions futures. Les résultats obtenus dans le cadre de ces expérimentations suggèrent que certaines provenances méridionales peuvent présenter une meilleure survie ou une meilleure tolérance à la sécheresse que le matériel local dans certaines conditions, notamment sur des sols peu profonds ou à faible disponibilité en eau. Par exemple, les plantations expérimentales du projet Giono ont montré de meilleures performances de certaines provenances méridionales de Fagus sylvatica et de Quercus petraea lors d’épisodes récents de chaleur et de sécheresse (ONF, 2022). Ces initiatives évaluent également le potentiel d’espèces non indigènes, considérées comme candidates potentielles pour les conditions climatiques futures, notamment Cedrus atlantica, plusieurs espèces du genre Abies (Abies bornmuelleriana, A. cephalonica, A. nordmanniana, …), du genre Quercus (Quercus cerris, Q. rubra) et du genre Pinus (Pinus radiata, P. taeda, P. pinaster, P. rigida, P. brutia, ...), actuellement cultivées ou testées en dehors de leur aire de répartition naturelle. Ces résultats doivent néanmoins être interprétés avec prudence, car les performances des espèces et des provenances peuvent varier fortement selon les conditions du site (Royer-Tardif et al., 2021).La migration assistée reste en effet associée à des incertitudes et à des risques importants. Une meilleure croissance ou survie à court terme ne garantit pas nécessairement une meilleure adaptation à long terme, notamment face aux gelées tardives, aux ravageurs, aux agents pathogènes ou aux événements climatiques extrêmes (Aitken and Bemmels, 2016). Par conséquent, les stratégies actuelles privilégient généralement une approche progressive et adaptative, fondée sur des essais à échelle limitée, la diversification des espèces et des provenances et un suivi régulier des performances. La migration assistée ne doit ainsi pas être considérée comme une solution unique au changement climatique, mais comme l’un des leviers d’une stratégie d’adaptation plus large, associant régénération naturelle, diversification des peuplements, adaptation de leur structure et suivi continu de leur évolution.
9. Conclusion
Les forêts subissent déjà des changements qui témoignent des effets du changement climatique. Ces changements devraient se poursuivre et s’intensifier avec la poursuite du réchauffement, même si leur ampleur et leur trajectoire restent incertaines et vont dépendre de nos comportements. Les projections climatiques suggèrent des transformations importantes de la végétation : un réchauffement de l’ordre de 4 °C d’ici la fin du XXIe siècle pourrait notamment favoriser, dans certaines régions, le passage de conditions tempérées vers des conditions de type méditerranéen et modifier profondément la composition des peuplements ainsi que la dynamique des écosystèmes. Les pertes de croissance et l’augmentation des dépérissements sont déjà particulièrement visibles dans les limites méridionales et dans certaines zones centrales des aires de répartition des espèces. Ils résultent notamment de l’augmentation des températures et de la sécheresse, de la prolifération de certains agents pathogènes, de l’accroissement du risque d’incendie et des dommages liés au vent. La rapidité de ces changements limite le temps disponible pour expérimenter, évaluer et déployer les différentes stratégies d’adaptation.
La composition future des forêts reste difficile à prévoir et dépendra à la fois de l’évolution des émissions de gaz à effet de serre, de la trajectoire du climat et de la capacité des espèces et des populations à s’adapter aux nouvelles conditions environnementales. Si l’acclimatation et la plasticité phénotypique peuvent contribuer à atténuer certains effets du changement climatique, elles ne suffiront pas à elles seules à préserver la composition actuelle des forêts. La gestion forestière adaptative peut contribuer à réduire leur vulnérabilité en agissant sur la structure des peuplements, leur diversité spécifique, leur densité, la préservation des ressources en eau et la régénération naturelle. Ces leviers peuvent notamment ralentir les processus de dépérissement et favoriser le maintien du couvert forestier, laissant davantage de temps aux populations pour s’adapter aux nouvelles conditions. Lorsque ces capacités d’adaptation apparaissent insuffisantes, le recours à des provenances ou à des espèces mieux adaptées peut également être envisagé, mais doit rester fondé sur une évaluation rigoureuse des bénéfices, des risques et des incertitudes associés. Malgré ces possibilités, certaines forêts atteignent progressivement les limites des conditions climatiques compatibles avec leur persistance, compromettant leur capacité à se maintenir et à se régénérer naturellement.
L’évaluation des trajectoires possibles et des stratégies d’adaptation nécessite donc une expertise fine des conditions locales, ainsi que la capacité à mobiliser et à confronter différentes sources de données et différents outils d’aide à la décision. La poursuite des recherches sera essentielle pour mieux identifier les peuplements vulnérables, caractériser les capacités d’adaptation des espèces et des populations et évaluer l’efficacité des différentes options de gestion dans des conditions climatiques changeantes. Les forêts revêtent une importance particulière dans ce contexte. Elles constituent à la fois des écosystèmes directement exposés au changement climatique et des composantes essentielles de son atténuation, notamment par leur capacité à stocker du carbone et à réguler de nombreux processus écologiques. Préparer les forêts actuelles aux conditions climatiques de demain constitue ainsi un défi majeur, qui nécessite d’anticiper les changements, de préserver les capacités d’adaptation naturelles des écosystèmes et de mettre en œuvre, lorsque cela est nécessaire, des stratégies de gestion diversifiées, progressives et adaptées aux contextes locaux.
Déclaration d’intérêts
L’auteur ne travaille pas, ne conseille pas, ne possède pas de parts, ne reçoit pas de fonds d’une organisation qui pourrait tirer profit de cet article, et n’a déclaré aucune autre affiliation que son organisme de recherche.